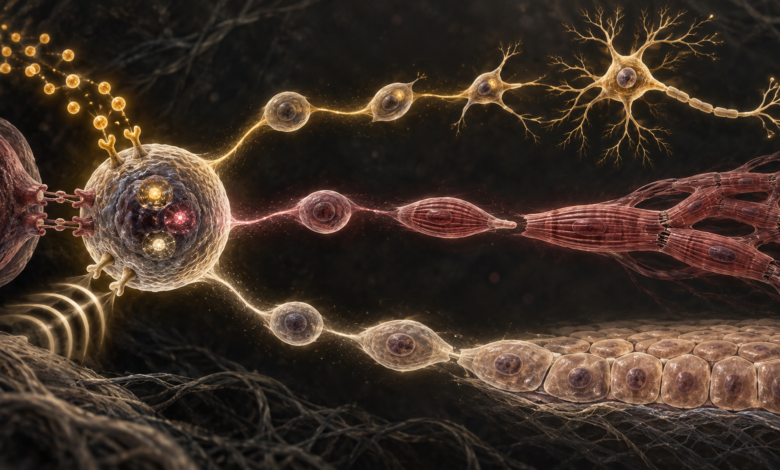
Bir hücre geleceğini önceden görmez. Bulunduğu yeri, komşularını ve geçmişini okuyarak bir kimliğe dönüşür.
Tek hücreden yüzlerce kimliğe
Bir nöronla kalp kası hücresi birbirine neredeyse hiç benzemez. Biri elektriksel sinyaller taşır ve uzun uzantılar geliştirir; diğeri ritmik biçimde kasılır. Deri hücresi ise dış dünyayla beden arasında dayanıklı bir sınır kurar. Buna rağmen bu hücrelerin tamamı tek bir döllenmiş hücreden gelir ve büyük ölçüde aynı DNA’yı taşır. Farklı olmalarının temel nedeni, farklı genlere sahip olmaları değil; aynı genomun farklı bölümlerini kullanmalarıdır.
DNA’yı bir plan olarak görmek kısmen doğrudur, fakat eksiktir. Çünkü genomda bir hücrenin hangi koşulda hangi programı çalıştırabileceğine ilişkin olanaklar bulunur; tamamlanmış bedenin her hücreye dağıtılmış ayrıntılı bir haritası değil. Nöronda sinir iletimine ait genler etkin tutulurken karaciğer işlevlerine ait programların çoğu kapalıdır. Karaciğer hücresinde aynı metnin başka bölümleri okunur. Hücre kimliği, sahip olunan DNA’dan çok DNA’nın nasıl kullanıldığıyla kurulur.
Plan olmadan düzen nasıl oluşur?
Ortaya çıkan beden son derece düzenli olduğu için her hücrenin içinde bütünün küçük bir haritası bulunduğunu düşünmek kolaydır. Oysa hücrelerin çoğu, tamamlanmış yapının nasıl görüneceğini bilmeden yalnızca yakın çevrelerindeki koşullara cevap verir. Bir kuş sürüsündeki tek kuş, sürünün gökyüzünde oluşturacağı biçimin planını taşımaz; yakındaki kuşların hızına ve yönüne tepki verir. Hücre topluluklarında da bütünsel örüntü, yerel etkileşimlerin ortak sonucunda ortaya çıkar.
İnsan embriyonik kök hücreleriyle yapılan deneyler bunu görünür hâle getirdi. Warmflash ve arkadaşları, kök hücreleri belirli büyüklükte dairesel alanlara yerleştirip BMP4 sinyali verdiklerinde hücrelerin rastgele dağılmadığını; farklı embriyonik tabakalara ait belirteçleri eş merkezli bölgeler hâlinde oluşturduğunu gösterdi [7]. Aynı genomu taşıyan hücreler, kolonideki yerlerine ve birbirlerinden aldıkları sinyallere göre ayrıştı. Düzen, DNA’nın içinden hazır bir resim gibi çıkmadı; hücrelerin birbirlerini etkilediği süreç içinde kuruldu.
İlk soru: Hücre nerede?
Embriyodaki hücreler aynı DNA’ya sahip olsalar da aynı yerde değildir. Farklı bölgelerden salgılanan morfojen adlı moleküller dokunun içinde yoğunluk farkları oluşturur. Kaynağa yakın hücre daha güçlü, uzaktaki hücre daha zayıf bir sinyalle karşılaşır. Hücre bu farkı yüzeyindeki reseptörlerle algılar; sinyal hücre içine taşınır ve çekirdekte bazı genlerin çalışmasını değiştirir. Böylece konum, doğrudan gen etkinliğine çevrilir.
Omurilik gelişiminde görev yapan Sonic Hedgehog sinyali bunun iyi bilinen örneklerinden biridir. Araştırmalar, hücrenin yalnızca sinyalin yoğunluğunu değil, ona ne kadar süre maruz kaldığını da işlediğini gösterir [1,2]. Aynı molekülün farklı dozları ve farklı süreleri, benzer öncül hücrelerden farklı sinir hücresi alt tiplerinin oluşmasına yardım eder. Dolayısıyla hücre yalnızca “burada ne kadar sinyal var?” sorusuna değil, “bu sinyali ne zamandır alıyorum?” sorusuna da moleküler bir cevap üretir.
Karar, tek bir genin emri değildir
Sinyaller çekirdeğe ulaştığında bazı transkripsiyon faktörlerini etkinleştirir. Bu proteinler DNA’nın belirli bölgelerine bağlanarak genleri açar veya kapatır. Fakat hücrenin kaderini tek bir “anahtar gen” belirlemez. Transkripsiyon faktörleri ağlar hâlinde çalışır: biri kendi programını güçlendirirken başka bir kimliği destekleyen faktörü baskılayabilir. Başlangıçtaki küçük farklar geri beslemeyle büyür; kararsız bir hücre giderek belirli bir programa yerleşir.
Hücre komşularını da okur. Notch-Delta gibi temas temelli iletişim sistemlerinde yan yana duran iki hücre arasında küçük bir fark keskinleşebilir; biri sinyali gönderen, diğeri alan duruma geçer ve iki hücre farklı yönlere ilerler [3]. Burada hücrenin cevabı yalnızca kendi içinde değildir. Yanındaki hücrenin ne olmaya başladığı, onun önünde hangi seçeneklerin açık kalacağını etkiler. Doku, merkezi bir yönetici olmadan yerel konuşmalarla düzen kurar.
Kimyasal mesajlar da tek bilgi kaynağı değildir. Hücreler üzerinde bulundukları yapının sertliğini, gerilimi ve basıncı algılar. Mezenkimal kök hücrelerle yapılan deneylerde yumuşak, kas sertliğinde ve daha sert yüzeylerin farklı hücresel yönelimleri desteklediği gösterildi [4]. Sertlik tek başına kader yaratmaz; ancak gen ağlarının ve çözünür sinyallerin nasıl yorumlanacağını değiştirir. Hücre, bulunduğu dünyanın yalnızca kimyasını değil dokusunu da okur.
Bir hücre bölünürken yalnızca çoğalmaz
Hücre bölünmesi genetik materyali iki yavru hücreye dağıtır; fakat bu iki hücrenin başlangıç koşulları her zaman aynı değildir. Ana hücre bazı proteinleri veya RNA moleküllerini bir kutupta toplayabilir. Bölünme sırasında bu maddeler yavru hücrelere eşitsiz geçerse biri kök hücre özelliğini korurken diğeri farklılaşmaya daha yatkın hâle gelebilir. Buna asimetrik hücre bölünmesi denir.
Eşitsizlik hücrenin dışından da doğabilir. Yavru hücrelerden biri kök hücreyi koruyan özel çevreyle temasını sürdürürken diğeri birkaç mikrometre uzağa itilip farklı sinyallerle karşılaşabilir. Genomları aynıdır; fakat artık konumları, komşuları ve aldıkları mesajlar aynı değildir. Küçük bir başlangıç farkı gen düzenleyici ağlar tarafından büyütülür. Böylece bölünme yalnızca hücre sayısını artırmaz; dokunun gelecekteki çeşitliliğini de üretir.
Geçmiş, hücrenin içinde nasıl kalır?
Bir hücre belirli bir yöne ilerledikçe yalnızca biçimi değişmez; gelecekte hangi sinyallere cevap verebileceği de değişir. DNA’nın proteinlerle oluşturduğu kromatin yapısı yeniden düzenlenir. Kullanılacak genler daha erişilebilir hâle gelirken alternatif kimliklere ait bölgeler kapanabilir. DNA metilasyonu ve histon değişiklikleri gibi epigenetik mekanizmalar bu düzenin hücre bölünmelerinden sonra da sürmesine yardım eder. Böylece bir deri hücresi, her bölünmede yeniden deri olmayı seçmek zorunda kalmaz.
Yine de bu kimlik mutlak değildir. Takahashi ve Yamanaka, fare fibroblastlarına dört transkripsiyon faktörü ekleyerek onları kök hücre benzeri bir duruma geri döndürebildi [5]. Bu deney, olgun hücrenin başka hücrelere ait genleri kaybetmediğini gösterdi. Kimlik, değişmez bir öz değil; gen düzenleyici ağlar ve epigenetik işaretler tarafından sürekli korunan bir durumdu. Sağlamdı, fakat uygun koşullarda yeniden yazılabilirdi.
Rastlantı var, fakat düzen rastlantı değildir
Birbirine çok benzeyen hücreler aynı sinyale tam olarak aynı cevabı vermeyebilir. Protein üretimindeki küçük dalgalanmalar, reseptör sayıları veya bölünme sırasında moleküllerin eşitsiz dağılması hücreler arasında fark yaratır. Genetik olarak özdeş kan öncül hücrelerinde yapılan çalışmalar, bu gen ifadesi dalgalanmalarının farklılaşma eğilimleriyle ilişkili olabileceğini göstermiştir. [6]. Rastlantı, bazı kader ayrımlarının başlangıç malzemesini sağlayabilmektedir..
Fakat gelişim bütünüyle zar atışı değildir. Geri besleme ağları, komşu hücrelerle iletişim, hücre göçü ve hatalı hücreleri ortadan kaldıran mekanizmalar bu küçük farkların bazılarını büyütür, bazılarını bastırır. Biyolojik düzen, gürültünün yokluğundan değil; gürültüye rağmen güvenilir sonuç üretebilen sistemlerden doğar.
Hücre gerçekten “bilir” mi?
“Bilmek” sözcüğü hücrede bilinç veya niyet bulunduğunu düşündürdüğü ölçüde yanıltıcıdır. Hücre gelecekteki bedenin planını zihninde tutmaz. Fakat çevresindeki farkları algılar, geçmiş sinyallerin izini korur ve aldığı bilgileri davranışındaki değişikliklere dönüştürür. Biyolojik anlamda bilgi, geleceğin bir tasviri değil; bir farkın sistemin sonraki hâlini değiştirebilmesidir.
Bu nedenle en doğru cevap şudur: Hücre ne olacağını önceden bilmez. Genleri ona nelerin mümkün olduğunu, bulunduğu yer hangi sinyallerle karşılaşacağını, komşuları hangi seçeneklerin açık kalacağını, geçmişi ise aynı sinyale bugün nasıl cevap vereceğini belirler. Hücresel kader tek bir anda verilmiş karar değil, olasılıkların zaman içinde daralmasıdır.
Bir hücrenin kimliği ne yalnızca içinde saklıdır ne de bütünüyle dışarıdan dayatılır. Kimlik, hücre ile çevresi arasında kurulan ilişkinin kararlılaşmış biçimidir. Hücre kimliğini içinde hazır bulmaz; çevresiyle kurduğu ilişkinin izlerinden oluşturur.
Kaynaklar
4. Engler AJ ve ark. Matrix elasticity directs stem cell lineage specification. Cell (2006).
5. Takahashi K, Yamanaka S. Induction of pluripotent stem cells by defined factors. Cell (2006).